

Morphologie der Gehölze: Wuchsformen, Verzweigung und Nomenklatur
Alles zur Morphologie der Gehölze: Was ist ein Baum, ein Strauch und eine Liane, wie funktioniert monopodiale Verzweigung und wie liest man wissenschaftliche Pflanzennamen samt Kultivaren. Ein praktischer Leitfaden für Gärtner.
Morphologie der Gehölze: Überblick für Gärtner
Unterscheiden Sie einen Baum von einem Strauch? Wissen Sie, was ein Brachyblast oder eine sympodiale Verzweigung ist? Ein übersichtlicher Leitfaden zu Gehölzmorphologie und botanischer Nomenklatur für jeden Gärtner.
Was ist ein Gehölz und wie unterscheidet es sich von einer krautigen Pflanze
Der allgemeine Begriff „Gehölz“ bezeichnet den Wuchstyp von Pflanzen, die mehrjährige, ausdauernde, verholzende Sprossachsen mit Erneuerungsknospen bilden; beides übersteht die ungünstigen Jahreszeiten (Winter, Trockenheit). Echte Gehölze zeichnen sich durch sekundäres Dickenwachstum der Sprossachse aus: Der Wechsel von Wachstums- und Ruhephase erzeugt konzentrische Jahresringe, die Außenfläche ist von Rinde bedeckt. Unechte Gehölze erfüllen den ersten Teil der Kriterien, bilden aber wegen der abweichenden Anordnung der Leitbündel keine Jahresringe – diejenigen, die für unsere Freilandbedingungen wenigstens eine Randbedeutung haben, gehören zu den einkeimblättrigen Pflanzen (Bambus, Yucca).
Wuchsformen der Gehölze: Baum, Strauch und Liane
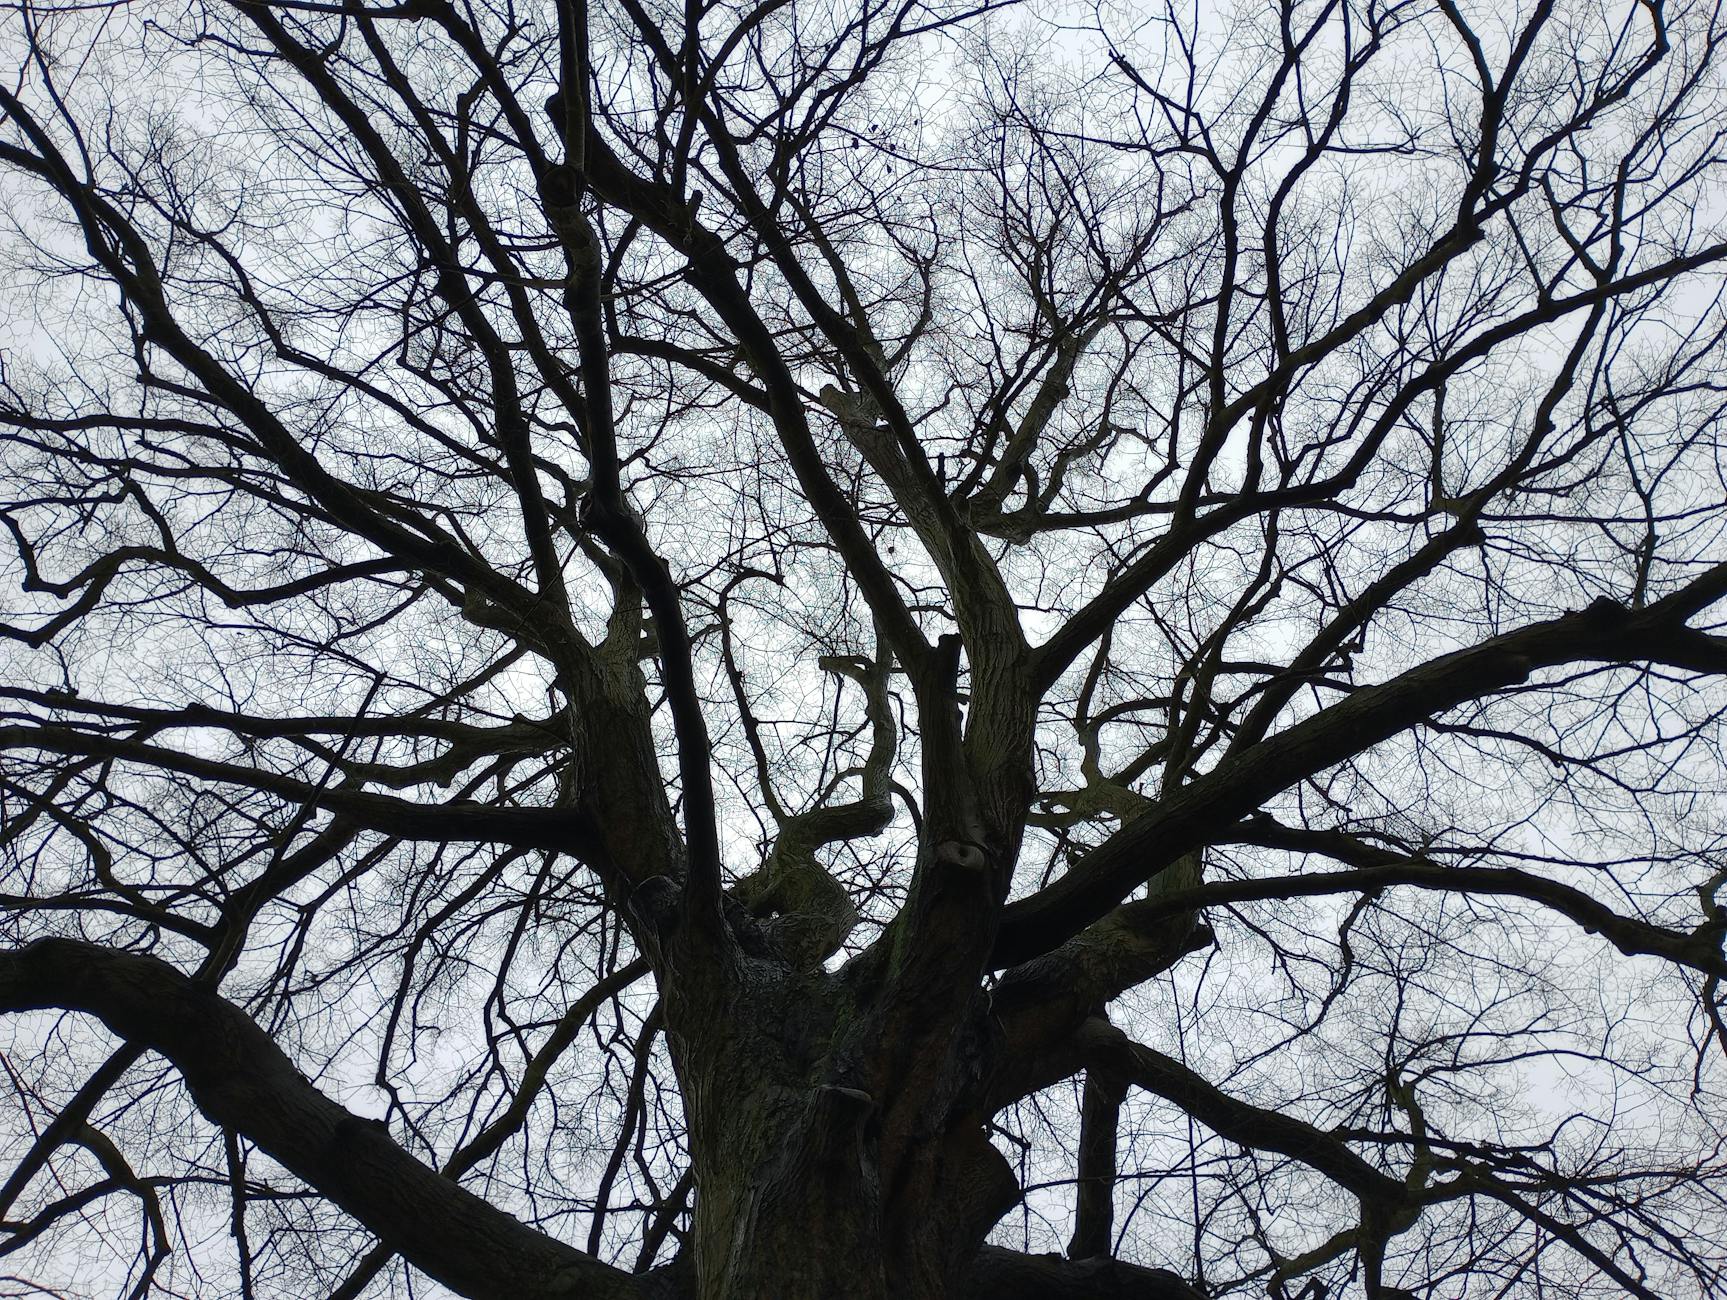
Die grundlegenden Wuchsformen der Gehölze unterteilen wir in Baum, Strauch und Liane, wobei die einzelnen Formen nicht scharf voneinander getrennt sind: Zwischen Baum und Strauch auf der einen und Strauch und Liane auf der anderen Seite gibt es mehr oder weniger fließende Übergänge. Ein Baum (z. B. die Gemeine Fichte oder die Stieleiche) zeichnet sich in ausgeprägter Form (bei erwachsenen Individuen) durch einen geraden, unverzweigten Stamm und eine verzweigte Krone aus; er erreicht Höhen in der Größenordnung von Dutzenden Metern. Ein Strauch ist ab Bodenhöhe in eine größere Zahl (weiter verzweigter) gleichrangiger Hauptäste verzweigt und erreicht Höhen in der Größenordnung von Metern. Manche Gehölzgattungen (oft artenreiche) bilden ausschließlich die Wuchsform Strauch, etwa Berberitze, Johannisbeere (Zierjohannisbeere) oder Spiere. Häufig sind Gattungen, bei denen einige Arten nur oder überwiegend Sträucher und andere Bäume bilden (z. B. Kiefer, Hasel, Erle, Weide, Eberesche). Umgekehrt können überwiegend strauchig wachsende Arten im Alter an einem geeigneten Standort Baumgestalt annehmen (z. B. Gemeine Eibe sowie Eingriffliger Weißdorn und Schwarzer Holunder). Die Liane bezeichnet allgemein die Wuchsform von Pflanzen (nicht nur Gehölzen), die nur mit einer Stütze in die Höhe wachsen können. Eine Übergangsgruppe zwischen Sträuchern und echten Lianen im eigentlichen Sinne bilden Gehölze, die man mitunter als Spreizklimmer bezeichnet – im Grunde Sträucher mit langen, biegsamen Ästen, die am offenen Standort ohne Stütze wachsen können, im Bestand anderer Gehölze aber mithilfe einer Stütze dem Licht entgegenwachsen; sie halten sich durch eine besondere Verzweigung fest, deren Wirkung Stacheln erhöhen
(z. B. Hundsrose oder Brombeere) oder Dornen (Bocksdorn oder Goji). Nach der Art des Festhaltens lassen sich die echten verholzenden Lianen, die bei uns im Freiland kultiviert werden, in windende, rankende und wurzelnde einteilen. Windende Lianen halten sich fest, indem sie die Sprossachse um die Stütze schlingen (z. B. Echtes Geißblatt oder Jelängerjelieber); rankende Lianen halten sich mit Ranken fest (Weinrebe); wurzelnde beziehungsweise haftende Lianen halten sich mit Haftwurzeln fest (Efeu als typisches Beispiel).
Verzweigungstypen bei Gehölzen: monopodial vs. sympodial
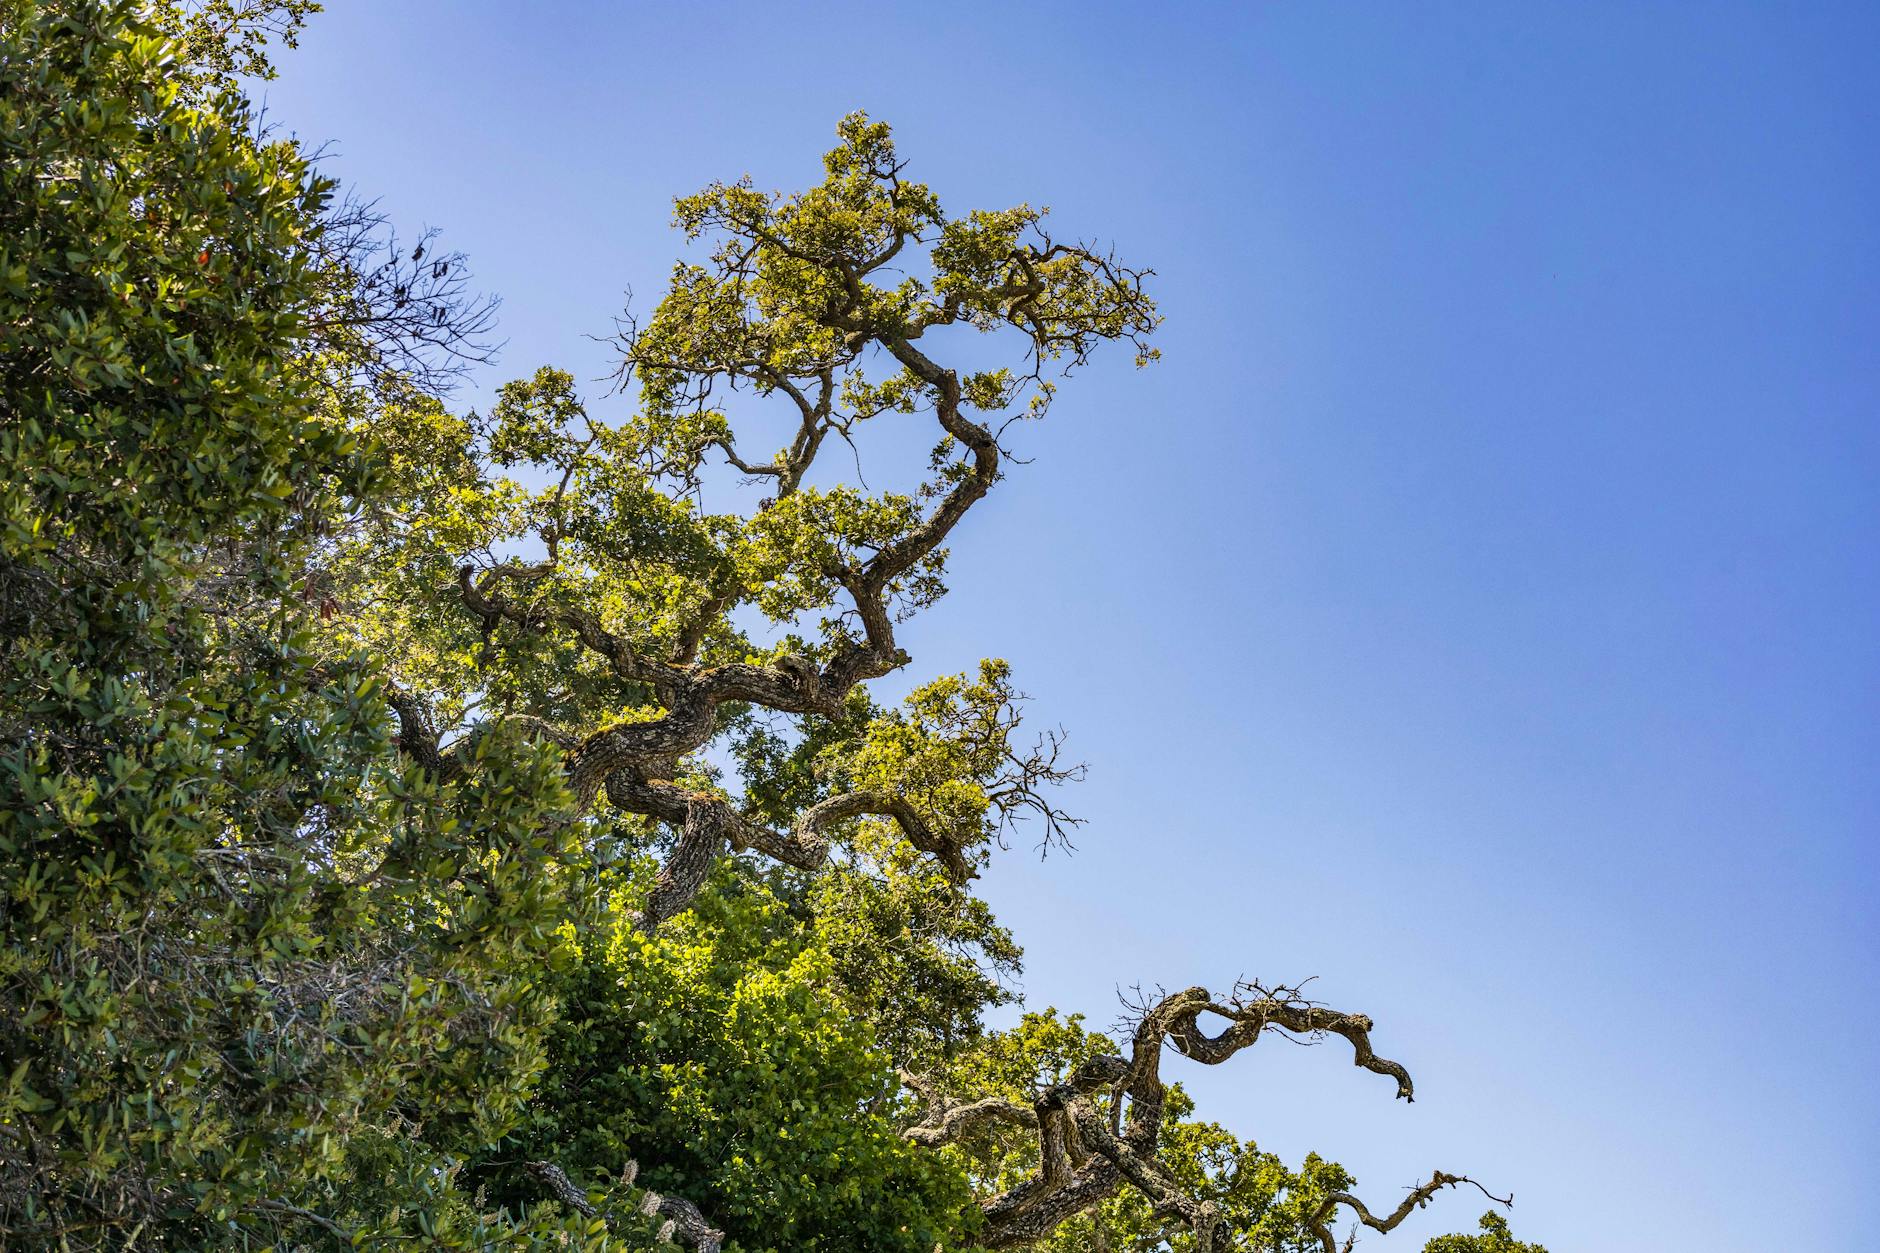
Die Sprossachse der Gehölze weist unterschiedliche Grade der Differenzierung auf. Allgemein unterscheiden wir an ihr einerseits Nodien („Knoten“), also die Positionen theoretischer Punkte, welche die Lage der primären Schuppen beziehungsweise Knospen nach der sogenannten genetischen Spirale wiedergeben, und andererseits Internodien, also die Abschnitte der Sprossachse zwischen den Nodien. Je nach Alter der Sprossachse und ihrer Länge beziehungsweise nach der Dichte der Internodien lässt sich die Sprossachse der Gehölze (in den am stärksten entwickelten Formen bei Bäumen) in mehrere Typen gliedern. Die jüngsten Sprossachsen bezeichnet man in der Praxis als Triebe. Die diesjährigen Triebe heißen Jahrestriebe, ältere Triebe bezeichnet man als einjährig oder – wenn eine Unterscheidung nötig ist – als zwei- oder mehrjährig. Nach der Länge unterscheiden wir lange, in der Regel im Frühjahr gebildete Triebe (Langtriebe, Makroblasten), Sommertriebe (die den Frühjahrstrieb in der zweiten Phase der Vegetationszeit bei üppigem Wuchs mancher Gehölze zusätzlich verlängern, etwa bei der Eiche und anderen Arten) sowie verkürzte, mehrjährige Kurztriebe, die Brachyblasten (z. B. bei der Lärche, Kirsche oder beim Apfelbaum).
Der Verzweigungscharakter der Gehölze ergibt sich in erster Linie aus der Lage und Stellung der Knospen, aus denen alle Äste hervorgehen. Die Grundstellung der Knospen ist theoretisch in der Achsel der primären Schuppen, in der Praxis meist in der Blattachsel beziehungsweise in der Achsel der Blattstiele. Nach der Fortsetzung des Wachstums der Hauptachse und nach der räumlichen Anordnung unterscheiden wir zwei Betrachtungsweisen des Verzweigungscharakters.
1. Nach der Fortsetzung des Wachstums der Hauptachse in der folgenden Vegetationsperiode unterscheiden wir monopodiale und sympodiale Verzweigung. Die monopodiale Verzweigung ist durch eine starke apikale (Gipfel-)Dominanz gekennzeichnet: Die aus der terminalen Knospe fortgesetzte Achse ist deutlich länger und stärker als die Seitenachsen (z. B. Fichte, Tanne, Ahorn, Eiche). Die sympodiale Verzweigung ist durch eine abgeschwächte Gipfeldominanz gekennzeichnet: Als Fortsetzung der Hauptachse dient eine Achse, die aus einer seitlichen (lateralen) Knospe hervorgegangen ist. Hier unterscheiden wir zwei praktisch bedeutsame Typen der Knospenstellung beziehungsweise Verzweigung: die wechselständige, als Monochasium bezeichnete, die häufiger ist (z. B. Linde, Ulme, Hainbuche), und die gegenständige, als Dichasium bezeichnete (z. B. Flieder). Eine gegenständige Knospenstellung haben allerdings auch manche Gehölze mit monopodialer Verzweigung (z. B. Tanne, Ahorn, Esche); sitzen an einem Nodium mehr als zwei Seitenäste (ursprünglich Knospen), spricht man von quirliger Verzweigung, was für die Stellung der Äste an der Terminalachse monopodialer Gehölze typisch ist, vor allem bei Nacktsamern (Nadelgehölzen beziehungsweise Koniferen).
2. Nach der räumlichen Anordnung der Achsen unterscheiden wir den Verzweigungscharakter im Hinblick auf die Achse der Sprossachse (an der Abzweigstelle des Astes von der Hauptachse) und im Hinblick auf die Ausrichtung der Äste bei senkrechter Aufsicht von oben. Bezogen auf die Achse sprechen wir von Basitonie (die stärksten Äste entspringen an der Basis der Hauptachse – typisch für Sträucher), Mesotonie (die stärksten Äste entspringen im mittleren Teil der Hauptachse) und Akrotonie (die stärksten Äste entspringen am Ende der Hauptachse – typisch für Bäume). Bezogen auf die Ausrichtung der Äste unterscheiden wir radiale Verzweigung (strahlige Anordnung gleichrangiger Äste) um eine mehr oder weniger senkrecht orientierte Hauptachse und dorsiventrale Verzweigung bei Gehölzen mit mehr oder weniger waagerecht orientierter (bogig geformter) Hauptachse. Bei der dorsiventralen Verzweigung lassen sich Epitonie, Amphitonie und Hypotonie unterscheiden, also die Bevorzugung der Oberseite der Hauptachse für den Austrieb üppiger Seitentriebe (z. B. Spiere, Holunder), der Seitenflächen (häufig bei Nadelgehölzen) oder der Unterseite (z. B. Eiche).
Architektur von Gehölzen und ihre Bedeutung in der gärtnerischen Praxis
Die Architektur eines Gehölzes ist das Ergebnis der Differenzierung und des Verzweigungscharakters seiner Sprossachse. Beteiligt ist daran auch das unterirdische Auswachsen von Knospen zu Ausläufern und Wurzelbrut. Zu den wichtigsten Merkmalen der Gehölzarchitektur zählen: das Vorhandensein eines Stammes, der Verlauf des Stammes und sein Anteil am Kronenaufbau, die Art der Kronenverzweigung und die Stellung (der Winkel) der Äste, Menge und Verteilung der Stockausschläge im ober- und unterirdischen Teil sowie die Bildung unterirdischer Ausläufer. Die Architektur der Gehölze verändert sich mit ihrem Alter und wird von äußeren Standortfaktoren (abiotischen wie biotischen), von der Art der Vermehrung und Jungpflanzenanzucht sowie von der Kultur am endgültigen Standort beeinflusst.
Die Kenntnis von Verzweigungscharakter und Architektur der Gehölze ist in der gärtnerischen Praxis wichtig. Sie dient in erster Linie der richtigen Bestimmung eines Gehölzes, der Beurteilung seiner Vitalität oder der Bioindikation des Standorts, ebenso für die Wahl der passenden Gehölzart oder des passenden Kultivars in der gärtnerischen Gestaltung, also bei Planung und Ausführung von Gehölzpflanzungen. Andererseits ist sie unerlässlich, um die richtigen Kultur- und Pflegemaßnahmen zu beherrschen, insbesondere Auslichtung, Verjüngungs- und Erziehungsschnitt sowie weitere Eingriffe in die natürliche Entwicklung eines Gehölzes oder seiner Bestände.
Grundlagen der botanischen Nomenklatur: warum Pflanzen lateinische Namen haben
Die Nomenklatur der Gehölze ist mit der Nomenklatur der Pflanzen insgesamt identisch, denn die Abgrenzung von Gehölzen und krautigen Pflanzenformen hat auf ihre Namensgebung und die damit verbundenen Umstände keinen Einfluss. Die Pflanzennomenklatur befasst sich (parallel und unabhängig zur Nomenklatur der Tiere) mit der wissenschaftlichen Namensgebung einschließlich der hierarchischen Ebenen (also der Kategorien beziehungsweise Rangstufen) taxonomischer (verwandtschaftlicher) Gruppen, allgemein also der Pflanzentaxa, in erster Linie der Arten. Pflanzennamen dienen der Verständigung, nicht dem Ausdruck von Merkmalen, Eigenschaften, geografischer Verbreitung oder Geschichte (auch wenn sie sich meist daraus ableiten). Pflanzennamen hängen vollständig vom akzeptierten taxonomischen Konzept ab. Die Taxonomie befasst sich allgemein mit der Klassifikation von Organismen in Gruppen nach Merkmalen, Eigenschaften sowie Entwicklungs- und Verwandtschaftsbeziehungen und bewertet deren Variabilität; sie ist eine wissenschaftliche Disziplin, die die Wirklichkeit in der Natur zu erfassen sucht. Trotz wissenschaftlicher Methoden hängt die Taxonomie bis zu einem gewissen Grad von der subjektiven Sicht einzelner Forscher und vom Einfluss verschiedener taxonomischer Schulen ab. Die Pflanzennomenklatur ist Teil eines weltweit verwendeten, in langer historischer Entwicklung entstandenen taxonomisch-nomenklatorischen Systems. Sie stützt sich auf zwei Systeme der Namensgebung, die von zwei internationalen nomenklatorischen Codes, richtiger Kodizes (Regel- und Empfehlungswerken), geregelt werden:
1. dem Internationalen Code der Botanischen Nomenklatur, „International Code of Botanical Nomenclature“, kurz ICBN – siehe Greuter & al., 2000, der sich mit der Namensgebung natürlich (durch Evolution) entstandener Pflanzengruppen befasst.
2. dem Internationalen Code der Nomenklatur für Kulturpflanzen, „International Code of Nomenclature for Cultivated Plants“, kurz ICNCP – siehe Trehane & al., 1995, der sich mit der Namensgebung von Pflanzengruppen befasst, die unter Mitwirkung des Menschen bestehen, also künstlich entstandene, ausgelesene oder gezielt erhaltene Kultursorten, das heißt Kultivare.*
Beide Codes sind von der wissenschaftlichen Gemeinschaft weltweit akzeptierte universelle Regeln für Auswahl, Bildung und Gebrauch von Pflanzennamen. Beide werden fortlaufend in unregelmäßigen mehrjährigen Abständen geändert und ergänzt, jeweils nach Abstimmung der Änderungen auf dem Internationalen Botanischen Kongress beziehungsweise dem Symposium der Kommission für NCP. Der Code für Kulturpflanzen ist gewissermaßen ein Aufbau auf dem botanischen Code, denn Kultivarnamen müssen sich stets auf botanische Pflanzennamen beziehen (jede Kultursorte hat ihren Ursprung in natürlichen Arten und ist aus einer wild wachsenden Pflanze oder einem Teil ihres Genoms hervorgegangen). Nach dem ICBN gebildete Pflanzennamen heißen wissenschaftliche Namen; sie sind ursprünglich überwiegend lateinisch, und stammen sie aus anderen Sprachen (vor allem aus dem Griechischen, aber auch aus vielen weiteren), so werden sie latinisiert, also nach lateinischer Grammatik behandelt, auch wenn ihre Herkunft eine andere ist. Umgekehrt müssen Kultivarnamen, die nach dem ICNCP gebildet werden, seit 1959 zur deutlichen Unterscheidung aus einer modernen Sprache stammen und nicht aus dem Lateinischen (lateinische Kultivarnamen werden nur dort akzeptiert, wo ältere Kultursorten, die vor diesem Jahr als botanische Taxa beschrieben wurden, nachträglich als Kultivare eingestuft worden sind). Außerhalb der Regeln des ICBN hat sich der Brauch eingebürgert, wissenschaftliche Pflanzennamen in gedruckten Texten – anders als Kultivarnamen – kursiv zu setzen (mit Ausnahme der Bezeichnungen der Rangstufen).
Trotz der bestehenden Regeln beider internationaler Codes muss man feststellen, dass die Pflanzennomenklatur eine komplizierte Materie ist, deren in die Praxis übertragene Ergebnisse – sich ändernde Namen für denselben Inhalt (dieselbe Pflanze) – dem Laien oder dem Praktiker gewöhnlich unzumutbar bis chaotisch erscheinen. Deshalb ist es angebracht, sich einige Gründe dafür in Erinnerung zu rufen. Ein allgemeiner Grund ist die lange Geschichte der Botanik, wie bei den (biologischen) Wissenschaften insgesamt. Die ersten Vorschläge, überhaupt Regeln für die Bildung von Pflanzennamen einzuführen, kamen erst Ende des 19. Jahrhunderts auf; rund 150 Jahre lang (seit 1753, siehe unten) wurden Pflanzen also ohne jegliche Regeln oder Grundsätze beschrieben und benannt. Erst nach 1908 begann man angesichts des wachsenden Chaos in der Pflanzenbenennung weltweit Regeln anzuwenden, die schrittweise präzisiert und zu den heutigen Codes erweitert wurden.
* Anmerkung: Seit dem Internationalen Botanischen Kongress in Melbourne (2011) heißt dieses Regelwerk International Code of Nomenclature for algae, fungi, and plants (ICN); der hier zitierte „Saint Louis Code“ von 2000 ist eine ältere Fassung, die noch als ICBN geführt wurde. Für Kulturpflanzen gilt heute die 9. Auflage des ICNCP (2016).
Taxonomie und Nomenklatur: wie wissenschaftliche Pflanzennamen entstehen
Die Taxa (der Pflanzen und ebenso der Tiere), also die Kategorien der Einteilung von Organismen, sind in ein einheitliches, verbindliches System geordnet, in dem sie hierarchisch nach einer fest eingeführten Reihe von Ebenen angeordnet sind; die Grundkategorie ist dabei die Art (Species). Die übergeordnete Kategorie über der Art ist die Gattung (Genus), weiter aufsteigend: Familie, Ordnung, Klasse, Abteilung und Reich (alle Pflanzen werden einem einzigen Reich zugeordnet). Ferner unterscheidet man Zwischenkategorien (Ebenen): den Tribus zwischen Familie und Gattung, Sektion und Serie zwischen Gattung und Art, Varietät und Form unterhalb der Art. Bei jeder der genannten Haupt- und Zwischenkategorien kann eine Unterkategorie mit der lateinischen Vorsilbe sub- unterschieden werden; die praktisch wichtigste davon ist die Unterart (Subspecies). (Ende des 20. Jahrhunderts wurde die Möglichkeit geschaffen, zwischen die genannten Ebenen bei Bedarf weitere künstliche Kategorien einzufügen, was von Forschenden nur ausnahmsweise in einzelnen Gruppen und in speziellen systematischen Arbeiten genutzt wird.)
Die heutige Nomenklatur der Pflanzen (und Tiere) nutzt das sogenannte binomische System, das nach der Mitte des 18. Jahrhunderts vom schwedischen Naturforscher C. von Linné eingeführt wurde. Das Erscheinungsdatum seines Grundwerks Species Plantarum, der 1. Mai 1753, gilt als Ausgangspunkt der gültigen Veröffentlichung wissenschaftlicher Namen und als Beginn der modernen Nomenklatur der Gefäßpflanzen (Farnpflanzen und Samenpflanzen); vor diesem Datum veröffentlichte Namen erkennt der ICBN nicht als gültig an. Nach diesem binomischen System hat jede wissenschaftlich bekannte biologische Art ihren lateinischen Namen, der aus zwei Teilen besteht: dem Gattungsnamen, der mit großem Anfangsbuchstaben geschrieben wird, und dem Artnamen, der als Beiwort, als Epitheton verstanden wird (z. B. Tilia platyphyllos). Das entstehende Binom (der binäre, also „doppelte“ Name) wird vom Namen oder der Abkürzung des Namens des ursprünglichen Autors begleitet, der die Art benannt und gültig beschrieben hat (z. B. Tilia platyphyllos Scop.). Abkürzungen werden nur bei älteren, bekannten Autoren verwendet (ihre Form wird heute in wissenschaftlichen Arbeiten nach dem Werk „Brummitt & Powell: Authors of Plant Names, Kew, 1992“ verlangt). Namen von Taxa oberhalb der Gattung sind einwortig, wobei jede Ebene ihre feste Endung hat (z. B. tragen Familiennamen die Endung -aceae, die an den Wortstamm des Namens einer der eingeschlossenen Gattungen angefügt wird, etwa Fagaceae). Die Verbindung des Gattungsnamens mit den Namen der der Gattung untergeordneten Zwischenkategorien (infragenerisch), mit dem Artepitheton und gegebenenfalls mit weiteren Epitheta innerartlicher (infraspezifischer) Zwischenkategorien nennt man formal nomenklatorische Kombination. Vor den Namen der Zwischenkategorien muss stets die betreffende Ebene angegeben werden, meist mit der üblichen Standardabkürzung (z. B. subg. für Untergattung, sect. für Sektion, subsp. für Unterart, var. für Varietät, f. für Form), etwa Pinus L. sect. Quinquefoliae Duhamel (das ist der korrekte Name für die sogenannten fünfnadeligen Kiefern). Binomische Artnamen können also um den Namen einer Unterart, Varietät oder Form ergänzt werden, sofern bei der betreffenden Art eines dieser Taxa unterschieden und gültig beschrieben wurde (z. B. Tilia platyphyllos subsp. cordifolia).*
Als Hybriden geltende Pflanzentaxa beziehungsweise Taxa hybriden Ursprungs werden meist mit dem mathematischen Multiplikationszeichen „ד gekennzeichnet, das je nach taxonomischer Ebene und Art der Bezeichnung gesetzt wird (die zweite, seltenere Möglichkeit ist das Voranstellen der griechischen Vorsilbe „notho-“ vor die Bezeichnung der Rangstufe, z. B. nothospecies für eine Kreuzung zwischen zwei Arten). Die Nomenklaturregeln akzeptieren zwei Arten, Hybriden zu bezeichnen: zum einen die sogenannte Hybridformel, die durch bloßes Einfügen des Zeichens „ד zwischen die Namen der mutmaßlichen Eltern entsteht [z. B. Populus alba L. × P. tremula L. oder Pyrus communis L. × Sorbus aria (L.) Crantz], zum anderen den binären Hybridnamen [für dieselben Beispiele siehe Populus × canescens (Aiton) J. E. Smith beziehungsweise × Sorbopyrus auricularis (Knoop) C. K. Schneider], dessen Bildung denselben Regeln folgt wie bei wissenschaftlichen Namen nicht hybrider Taxa. Nach der jüngsten Fassung der Regeln der botanischen Nomenklatur soll das Zeichen „ד ohne Leerzeichen unmittelbar vor dem ersten Buchstaben des Hybridnamens beziehungsweise seines Epithetons stehen (wird statt des Zeichens der Buchstabe „x“ verwendet, ist ein Leerzeichen angebracht); für die Hybridformel gilt das nicht.
Damit die botanische (und ebenso die zoologische) Nomenklatur funktionieren, also ihr Hauptziel erfüllen kann – der Verständigung zwischen Menschen der ganzen Welt zu dienen –, müssen die Namen der Taxa auf Familienebene und darunter (vor allem der Arten) an einen sogenannten nomenklatorischen Typus (im Folgenden nur Typus) gebunden sein. Typus des Namens einer Art oder eines innerartlichen Taxons ist ein Belegexemplar, eine Probe davon oder gegebenenfalls eine Abbildung. Dieses Typuselement dient dann als Vergleichsmaßstab, damit möglichst objektiv nachvollziehbar bleibt, welches biologische Objekt der Name bezeichnet. Die Umstände der Typisierung von Namen sind verhältnismäßig kompliziert. Die Typusmethode ist relativ neu, über Typen wurde erst Mitte des 20. Jahrhunderts nachgedacht; ältere Namen, die seit Linnés Zeiten über rund 200 Jahre gebildet wurden, haben daher ursprünglich keine Typen, sondern diese werden nachträglich von Spezialisten, die die betreffende taxonomische Gruppe revidieren, aus dem verfügbaren Material ausgewählt. Seit 1958 besteht bei der Beschreibung eines neuen Pflanzentaxons (oder Tiertaxons) die Pflicht, einen Typus festzulegen, sonst gilt der Name nicht als gültig. Neben der Typusangabe war lange auch eine lateinische Begleitbeschreibung, wenigstens in knapper Form (Diagnose genannt), unerlässliche Bedingung für die gültige Veröffentlichung des Namens eines neuen Pflanzentaxons.
Synonyme und Homonyme: warum sich Pflanzennamen ändern
Weiter ist zu betonen, dass sich Pflanzennamen im Prinzip aus zwei spezifischen Gründen ändern. Zum einen – und das ist die Mehrzahl der Fälle – aus taxonomischen und seltener aus rein nomenklatorischen Gründen. Taxonomie und Nomenklatur dürfen nicht vermischt oder verwechselt werden, es sind zwei aufeinanderfolgende, völlig unabhängige Schritte. Das taxonomische Studium einzelner Pflanzengruppen geht von klassischen Ansätzen aus, doch den Erkenntnisstand prägen in letzter Zeit zunehmend unterstützende moderne Disziplinen, vor allem Zytologie, Biochemie und Molekularbiologie. Ergebnis der taxonomischen Arbeit ist die Klärung der Verwandtschaftsverhältnisse in der untersuchten Gruppe, also etwa die Abgrenzung von Gattungen, Arten oder Varietäten und die Bildung einer bestimmten Taxonstruktur. Nach Abschluss der taxonomischen Arbeit folgt als zweiter Schritt die nomenklatorische Lösung. Dieser Taxonstruktur werden die entsprechenden Namen zugeordnet, und falls kein Name den Regeln des ICBN entspricht, muss ein neuer Name gebildet werden (das betreffende Taxon muss also in der Regel neu beschrieben werden). In modernen taxonomischen Fächern (z. B. genetischen Molekularanalysen) liegt die größte Schwierigkeit in der Interpretation der gewonnenen Daten und in ihrem Verhältnis zu den Erkenntnissen klassischer direkter Beobachtungsmethoden (vor allem der vergleichenden Morphologie und Anatomie). Jedes taxonomische Konzept wird nomenklatorisch durch den sogenannten korrekten Namen ausgedrückt, den es für ein Taxon in einer bestimmten Abgrenzung, Stellung und Rangstufe nach dem ICBN nur einmal geben sollte. Als korrekter Pflanzenname kann nur ein legitimer Name angenommen werden; dessen Voraussetzung ist, dass er ein gültiger (valider) und sogenannt wirksam (effektiv) veröffentlichter Name ist.
Diese drei Qualitätsstufen von Namen setzen die Übereinstimmung mit den einschlägigen Regeln (Artikeln) des ICBN voraus, die formal Gesetzesparagrafen ähneln. Die letzte, unterste Stufe (wirksam veröffentlichter Name) betrifft Art und Ort der Publikation; die höheren Stufen – Gültigkeit und Legitimität des Namens – sind an immer weitere Regeln des ICBN gebunden (sie betreffen den Inhalt des Textes, der den Namen in der Originalpublikation begleitet, und das Verhältnis des Namens zur betreffenden Pflanze und zu früher veröffentlichten Namen). Das Grundproblem der Nomenklatur ist jedoch, dass ein und dieselbe Pflanze aufgrund unterschiedlicher Ansätze und Methoden von verschiedenen Forschenden in unterschiedlicher Abgrenzung (geografisch oder merkmalsbezogen), Stellung (im Verhältnis zu verwandten Taxa) und Rangstufe (hierarchischer Ebene, also taxonomischer Kategorie) aufgefasst werden kann. Ein weiteres Problem ist, dass Laien, Praktiker und auch die botanische Fachöffentlichkeit die wissenschaftlichen Namen aus populäreren und breiter angelegten Werken übernehmen (lokale oder regionale Floren und Bestimmungsschlüssel, Bildatlanten, thematische Handbücher) und nicht aus spezialisierten, streng wissenschaftlichen Arbeiten. Die Autoren solcher zusammenfassenden Handbücher und populärwissenschaftlichen Veröffentlichungen gehen nicht immer von den strengen Regeln für Effektivität, Validität und Legitimität der Namen aus und schreiben zudem häufig nur passiv Namen aus unterschiedlichen älteren Publikationen ab, die zu einer Zeit verfasst wurden, als die Kenntnisse über die betreffende Pflanzengruppe geringer waren.
Der Gebrauch botanischer Pflanzennamen
Wissenschaftliche Pflanzennamen müssen nicht immer mit ihren Autoren geschrieben werden – verlangt wird das nur in taxonomischen oder nomenklatorischen Arbeiten (üblicherweise mit Angabe der Literaturquelle einschließlich Seite und Erscheinungsjahr oder, wenn zeitliche Verhältnisse ausgedrückt werden sollen, wenigstens mit dem Jahr in Klammern hinter dem Autornamen) und dort, wo das Weglassen der Autorschaft Verwirrung stiften könnte. In populären Veröffentlichungen oder in der Erfassung von Pflanzenmaterial, in Listen und Übersichten, aber auch in manchen floristischen Handbüchern wird die Autorschaft aus Platzgründen häufig weggelassen. Würden in den praktischen Fächern und der entsprechenden Literatur strikt nur korrekte Namen verwendet, wäre die Angabe der Autorschaft im Grunde entbehrlich. Ohne Fachkenntnisse und die nötige Literatur ist es allerdings nicht immer leicht festzustellen, welcher Name für ein Taxon der korrekte ist. Da häufig auch unrichtige Namen verwendet werden, kann es ohne Autorangabe leicht zu Verwirrung kommen. Einzelheiten zur Zitierweise der Autorschaft von Pflanzennamen sind unten an einem Beispiel dargestellt.
Unübersichtlich wird die Nomenklatur der Pflanzen und der Gebrauch ihrer Namen in der Praxis vor allem durch Synonyme, die zu einem Taxon im Lauf der langen historischen Entwicklung des Faches nach und nach entstanden sind. Synonyme sind, wie das Wort besagt, Wörter beziehungsweise Namen gleicher Bedeutung, gleichen Inhalts. Gemeint ist dabei gleicher taxonomischer Inhalt. In der Botanik unterscheidet man nomenklatorische und taxonomische Synonyme. Die Definition besagt, dass nomenklatorische Synonyme auf demselben Typus des Namens beruhen und taxonomische auf verschiedenen Typen. (Die Zoologie verwendet dieselbe Unterscheidung, nennt sie aber objektive und subjektive Synonyme, was für den praktischen Nutzer leichter verständlich ist.) Parallel zu den Synonymen treten in der Pflanzennomenklatur auch Homonyme auf, also gleich lautende Namen, die jedoch für verschiedene Pflanzen gebildet wurden. Der häufigste Grund für die Entstehung nomenklatorischer Synonyme sind eben die sogenannten späteren Homonyme, also Fälle, in denen nachträglich entdeckt wird, dass der Name eines Taxons in dieser Kombination bereits früher von einem anderen Autor für ein völlig anderes und meist nicht einmal verwandtes Taxon verwendet wurde, sodass für das später beschriebene Taxon unter Beibehaltung seines Typus ein neuer Name gebildet werden muss. Ein Beispiel ist die Tränenkiefer, eine asiatische Kiefer mit dem Namen Pinus wallichiana A. B. Jackson (1938); ursprünglich wurde sie als Pinus excelsa Wall. ex D. Don (1828) beschrieben – das ist jedoch ein späteres Homonym zum Namen Pinus excelsa Lamarck (1778), der selbst ein jüngeres (überflüssiges) Synonym für Picea abies (L., 1753) H. Karst. darstellt (für die Frage der Homonymie ist Lamarcks Name gleichwohl wirksam). Pinus wallichiana A. B. Jackson und Pinus excelsa Wall. ex D. Don sind also nomenklatorische Synonyme, und der erste davon ist der einzige korrekte Name für die Tränenkiefer, weil er gezielt als neuer Name für das zu ersetzende spätere Homonym gebildet wurde (theoretisch ist er also an denselben Typus gebunden). Im genannten Beispiel wird heute nur noch der korrekte Name verwendet, weil er längst eingeführt ist; in einer Reihe anderer Fälle werden jedoch mitunter beide Namen für dasselbe Taxon gebraucht, weil sich der korrekte Name noch nicht durchgesetzt hat.
Größere Probleme bereiten in der Praxis allerdings die taxonomischen Synonyme, deren Anerkennung (als Synonyme) – so eindeutig die Gründe dafür auch erscheinen mögen – von der Auffassung (Abgrenzung) des Taxons abhängt, die theoretisch immer bis zu einem gewissen Grad subjektiv ist. In weniger eindeutigen Fällen, oder wenn ein Forscher ältere veröffentlichte Angaben unkritisch und ungeprüft übernimmt, kommt es leicht dazu, dass ein Forscher zwei (oder mehr) Artnamen für Synonyme hält, obwohl sie von entgegengesetzten Enden des Verbreitungsgebiets (Areals) einer realen Art beschrieben wurden, während ein anderer Forscher dieselben Namen als korrekte Namen zweier (oder mehrerer) selbstständiger Arten auffasst. Das ist ein gewöhnlicher Fall bei lange bekannten Arten mit ausgedehntem Areal, etwa in ganz Mitteleuropa und großen Teilen Westeuropas. (Es sei daran erinnert, dass die Botanik eine additive, historisch alte Wissenschaft ist, in der heutige Autoren an die Erkenntnisse früherer Autoren anknüpfen – eine Wissenschaft, in der die Arbeitsergebnisse alter Autoren nicht übergangen werden können.) Am folgenden hypothetischen Beispiel zeigen wir mehrere mögliche, keineswegs außergewöhnliche Szenarien von Namensänderungen bei Pflanzen, zu denen es vor allem infolge der historischen Entwicklung des Wissens kommt. (Menschen aus praktischen Berufen halten solche Änderungen oft für eine überflüssige „Umbenennung“ von Pflanzen.) Eine hypothetische großräumig verbreitete Art der Gattung „W“ könnte (sehr knapp und vielleicht wenig treffend) Ende des 18. Jahrhunderts aus Frankreich unter dem Namen „x“, weiter Mitte des 19. Jahrhunderts aus Polen unter dem Namen „y“ und Anfang des 20. Jahrhunderts aus Ungarn unter dem Namen „z“ beschrieben worden sein, wobei die einzelnen Autoren dieser Namen zu verschiedenen Zeiten in verschiedenen Ländern lebten und weder die Pflanzen anderer Länder noch womöglich die seltene alte Literatur ihrer älteren Kollegen kannten. Mitte des 20. Jahrhunderts untersucht ein Forscher, der die betreffende taxonomische Gruppe revidiert, die Typen der Namen „y“ und „z“ und bestätigt durch einen Besuch und das Auffinden entsprechender Pflanzen den klassischen Fundort (locus classicus) der Pflanze, nach der die Art „x“ beschrieben wurde (ihr Typus fand sich nirgends, doch die Fundortangabe steht in der Originalquelle). Durch Vergleich stellt dieser Forscher fest, dass alle drei Namen eine einzige Art repräsentieren, die nach dem Prioritätsprinzip mit dem ältesten gültigen Namen „x“ zu bezeichnen ist (sofern keine anderen taxonomischen oder nomenklatorischen Hindernisse auftreten); im genannten Beispiel sind die Namen „W x“, „W y“ und „W z“ also taxonomische Synonyme.
Derselbe Fall könnte sich jedoch verkomplizieren, wenn ein (womöglich derselbe) Forscher später in einem wenig bekannten französischen Herbarium den ursprünglichen Typus des Namens „W x“ entdeckte (also einen eindeutig bezeichneten und vom ursprünglichen Autor signierten Beleg) und überrascht feststellte, dass dieser zwar ein verwandtes, morphologisch aber abweichendes Taxon repräsentiert, das sinnvollerweise als eigene Art anzuerkennen ist (die selten und lokal in der betreffenden Region Frankreichs nahe dem Vorkommen oder stellenweise gemeinsam mit der weit verbreiteten Art auftritt) – dann muss der Name „x“ für diese lokale Art reserviert bleiben, und die weit verbreitete Art muss durch die zwingende Übernahme des Namens „y“ nach dem Prioritätsprinzip „umbenannt“ werden. Ein anderer Forscher kann jedoch eine konservativere taxonomische Auffassung vertreten und aus bestimmten (subjektiv) bevorzugten Gründen das lokale französische Taxon für eine bloße Unterart der weit verbreiteten Art halten; er wird sich aber dem nomenklatorischen Prioritätsprinzip beugen und umgekehrt die weit verbreitete Unterart als jüngeres Taxon dem älteren Taxon unterordnen müssen, das die Art mit lokalem Areal repräsentiert. Deshalb wird er für die weit verbreitete Unterart die neue Kombination „W x subsp. y“ bilden müssen, wodurch automatisch als sogenanntes Tautonym (durch Wiederholung des Ausgangsepithetons) die Kombination „W x subsp. x“ für die lokale Unterart entsteht (sofern sie eigenständig betrachtet wird), wobei hinter dem Tautonym kein Autorname angegeben wird.
Ein einfaches konkretes Beispiel für zwei taxonomische Synonyme, deren uneinheitlicher Gebrauch bis heute Verwirrung in der dendrologischen Literatur und vor allem in der gärtnerischen Praxis stiftet, sind die Namen Pinus heldreichii H. Christ (1863), gestützt auf eine Aufsammlung vom Olymp in Griechenland, und Pinus leucodermis Antoine (1864), gestützt auf Material aus den Bergen nahe der Bucht von Kotor in Süddalmatien. Beide Namen repräsentieren zweifellos eine einzige reale, sehr eigenständige Kiefer mit Verbreitung in Südosteuropa, die auch in Kultur recht häufig ist. Eine grundlegende Eigenschaft aller sich geschlechtlich fortpflanzenden Organismen ist ihre Variabilität, die sich nach außen in einer gewissen Formenvielfalt zeigt, also im etwas unterschiedlichen Aussehen der Individuen (eine Population einer offensichtlich einheitlichen Art weist häufig eine größere Spanne individueller Variabilität auf, als sie zwischen durchschnittlichen Individuen zweier Populationen aus geografisch entfernten Arealteilen derselben Art besteht). Wurde eine einzige Art in der Geschichte der Botanik zweimal oder öfter beschrieben, so ist klar, dass dies nicht anhand morphologisch völlig identischen Materials geschehen sein kann. In unserem konkreten Beispiel der Panzerkiefer, deren korrekter Name nach dem Prioritätsprinzip eindeutig nur Pinus heldreichii lautet, wurde das (um nur ein Jahr) jüngere, von Antoine beschriebene Taxon sehr lange häufig als Varietät des älteren Taxons geführt, also als P. heldreichii var. leucodermis (Antoine) Markgraf ex Fitschen (1930). Grund für die Abtrennung des jüngeren Taxons als eigene Varietät waren gewisse Unterschiede in den morphologischen Beschreibungen beider Taxa (für keinen der beiden Namen wurde bislang ein Typus gefunden oder ausgewählt) und die unzureichende Kenntnis der individuellen Variabilität der Art in natürlichen Populationen. Mit der allgemeinen Tendenz zu einer engeren taxonomischen Artauffassung im Lauf des 20. Jahrhunderts kam es dann ohne kritische Bewertung der Sachlage zur erneuten mechanischen Verwendung des ursprünglichen Namens P. leucodermis für eine angeblich eigenständige Art. Diese unkritische Auffassung veröffentlichte auch G. Krüssmann in seinem Handbuch der Nadelgehölze (Krüssmann, 1983), das in der gärtnerischen Praxis ein weit verbreitetes Standardwerk ist und in dieser Frage die Verwirrung um die Nomenklatur der Panzerkiefer vertieft hat.
Wie man die Autoren botanischer Pflanzennamen korrekt zitiert
Am Beispiel dieser Kiefer lässt sich auch die Zitierweise der Autorschaft von Pflanzennamen gut zeigen, die allgemein sehr unterschiedlich und häufig fehlerhaft gehandhabt wird, was die Verwirrung bei Pflanzennamen vergrößert. (In diesem Beispiel lassen wir außer Acht, dass die Anerkennung der Varietät leucodermis bei Pinus heldreichii taxonomisch unbegründet ist.) Das vollständige Zitat des Namens Pinus heldreichii var. leucodermis lautet: „Pinus heldreichii H. Christ var. leucodermis (Antoine) Markgraf ex Fitschen in Beissner, Handb. Nadelholzk., ed. 3, p. 404. 1930.“. Wir konzentrieren uns hier nur auf das Zitat der Varietät selbst, bei der hinter dem Epitheton „leucodermis“ eigentlich vier Autoren stehen. Antoine ist der Autor des sogenannten Basionyms, definiert als der Name, der das betreffende Epitheton erstmals bringt, also die Namenskombination, in der das konkrete Epitheton zuerst erschien – in diesem Fall die Kombination „Pinus leucodermis“ im Basionym „Pinus leucodermis Antoine“: Der Autor des Basionyms steht bei der Varietät in Klammern, weil nachträglich der Status, also die ursprüngliche Rangstufe des Taxons, geändert wurde – hier von der Art zur Varietät [er stünde auch dann in Klammern, wenn die Kombination geändert worden wäre – theoretisch etwa durch Überführung der Art in eine andere Gattung, gegebenenfalls zugleich mit Status- und Kombinationsänderung, was in diesem Fall 1916 auf Grundlage unzureichender Informationen durch die Bildung des Namens Pinus nigra J. F. Arnold var. leucodermis (Antoine) Rehder ebenfalls geschah]. Der Autor des Basionyms ist von allen der wichtigste und darf (wenn man sich überhaupt für die Angabe der Autorschaft entscheidet) nicht weggelassen werden (die zoologischen Nomenklaturregeln erkennen nur den Autor des Basionyms an, weitere werden nie genannt; die botanischen Regeln sind in dieser Hinsicht komplizierter). Fitschen ist der Autor der konkreten Kombination und der Rangstufe des neuen Taxons (hier der Varietät), das erstmals gültig (= in) im zitierten Werk des Autors Beissner auf der zitierten Seite im Jahr 1930 veröffentlicht wurde. Markgraf steht vor dem Symbol ex, was bedeutet, dass er den Namen in dieser Kombination zuerst verwendet, ihn aber nicht gültig veröffentlicht hat. Die knappe und für praktische Fächer völlig ausreichende Zitierweise der Autorschaft besteht darin, den vor der Präposition ex genannten Autor wegzulassen (nicht umgekehrt!, wie es in der Praxis üblich ist) sowie den hinter der Präposition in – die einzige korrekte Form des Kurzzitats der Autorschaft lautet also „Pinus heldreichii var. leucodermis (Antoine) Fitschen“, [nicht P. h. var. leucodermis (Antoine) Markgraf oder gar P. h. var. leucodermis Markgraf]. Häufig sind an der Autorschaft eines Taxonnamens zwei oder mehr Autoren zugleich beteiligt – bei zwei Autoren steht zwischen ihren Namen das Symbol et (= lateinisch für „und“) oder das gleichwertige Zeichen (Ampersand) „&“, bei mehreren Autoren wird nur der Name des ersten Autors genannt (in der Reihenfolge der Originalquelle) und dahinter die Abkürzung et al. (= und andere); von einem mit et beziehungsweise „&“ verbundenen Autorenpaar darf keiner weggelassen werden.
Kultivare: Nomenklatur und Registrierung von Kulturpflanzensorten
Die Namensgebung der Kulturpflanzen ist zwar durch den ICNCP kodifiziert (siehe oben), doch die Entstehung von Kultivaren wird tatsächlich vom Bestreben angetrieben, Neuheiten für den Gartenbauhandel und für die landwirtschaftliche oder forstliche Produktion zu gewinnen; deren gemeinsamer Nenner ist die Wirtschaftlichkeit, nicht die Wissenschaft wie bei der botanischen Nomenklatur. Aus diesem Grund entstehen neue Kultivare weniger koordiniert, und die Regeln ihrer Namensgebung werden in der Praxis (vor allem im Gartenbau) weniger streng eingehalten. Zu den Grundregeln für die Schreibweise von Kultivarepitheta (und damit von Kultivarnamen) gehören ihre nichtlateinische Form (oben erwähnt) und die Notwendigkeit, sie an einen akzeptierten botanischen wissenschaftlichen, also lateinischen Namen anzuhängen (der in gedruckten Texten üblicherweise kursiv gesetzt wird, anders als das Kultivarepitheton). In der Praxis werden Kultivarnamen also meist hinter Artnamen gesetzt, sie können aber auch direkt an den Gattungsnamen angehängt werden (wenn die genauere Zuordnung unbekannt ist oder der Kultivar aus mehreren Arten gezüchtet wurde) oder gegebenenfalls hinter den Namen eines innerartlichen Taxons (Unterart oder Varietät), der in der Praxis jedoch meist weggelassen wird. Eine weitere wichtige Regel schreibt strikt vor, jedes Wort des Epithetons mit großem Anfangsbuchstaben zu schreiben (außer Konjunktionen und Präpositionen). Die Kennzeichnung eines Kultivars ist heute nur mit Apostrophen unmittelbar vor und hinter dem Epitheton erlaubt, und zwar entweder mit geraden (‛…‘) oder in Form einfacher hochgestellter Anführungszeichen (‛…‘), während die Kennzeichnung mit doppelten Anführungszeichen („…“ oder „…“) oder mit der Abkürzung „cv.“ beziehungsweise „var.“ nicht verwendet werden sollte. Kultivarepitheta können aus mehreren Wörtern bestehen, doch sollte die Länge des Epithetons insgesamt 10 Silben und 30 Zeichen nicht überschreiten und nicht nur aus allgemeinen beschreibenden Wörtern in adjektivischer Form gebildet sein (z. B. verschiedensprachige Entsprechungen von Wörtern wie „groß weiß“, „gefüllt rot“ und ähnlich). Ferner sollten Kultivarepitheta weder allein noch als letztes Wort des Epithetons den botanischen, allgemeinen oder volkstümlichen Namen (in welcher Sprache auch immer) einer Pflanzengattung oder -art enthalten (z. B. ‚Camellia‘, ‚Heather‘ beziehungsweise ‚Perfect Rose‘, ‚Red Kalmia‘); ebenso sollten Kultivarepitheta nicht die Wörter „variety“ und „form“ oder deren Abkürzung enthalten.
Der ICNCP erlaubt es, in vollständigen Taxonnamen sogenannte Kultivargruppen anzugeben, also verwandtschaftliche Gruppen von Kultivaren bei stärker durchgezüchteten Gattungen. Kultivargruppen tragen einen eigenen Namen mit großen Anfangsbuchstaben und als letztes Wort „Group“ oder eine andere sprachliche Entsprechung, etwa „Gruppe“; sie stehen weder in Apostrophen noch in Anführungszeichen und werden auch sonst nicht gekennzeichnet, sind sie jedoch mit einem Kultivarepitheton verbunden, werden sie in runde oder eckige Klammern gesetzt – zum Beispiel: Hydrangea macrophylla (Hortensia Group) ‚Ami Pasquier‘ beziehungsweise Hydrangea macrophylla ‚Ami Pasquier‘ (Hortensia Group).
Die Einführung des Namens eines neuen Kultivars verlangt heute neben den oben genannten nomenklatorischen Grundsätzen die Einhaltung weiterer Bedingungen. Der neue Name muss zunächst in einem angemessen verbreiteten, datierten Druckerzeugnis veröffentlicht und dort von einer Beschreibung des neuen Kultivars begleitet werden. Im Rahmen dieser Beschreibung wird empfohlen, die Merkmale anzugeben, durch die sich der Kultivar von verwandten Taxa unterscheidet, eine Abbildung beizufügen, die bekannte Elternschaft und Geschichte zu nennen, den Züchter, den Urheber und die Etymologie des Epithetons anzugeben sowie den Vertreiber (denjenigen, der den neuen Kultivar in den Verkehr bringt). Die internationale Anerkennung neu eingeführter Kultivare setzt nach dem ICNCP die Aufnahme des Namens in das Register der Internationalen Registrierungsstellen für Kultivare (International Cultivar Registration Authorities, ICRAs) voraus; dorthin sollten eine Kopie der Originalpublikation des Kultivars und ein repräsentatives Muster (ein Herbarbeleg – er kann auch an eine öffentliche Herbarinstitution gehen) oder eine lebende Pflanze geschickt werden, empfohlen wird zudem eine Farbfotografie oder anderes Bildmaterial. Die internationalen Registrierungsstellen sind land-, forst- und gartenbauliche Einrichtungen, die die internationale Erfassung von Kulturpflanzen führen und von der „International Society for Horticultural Science“ (ISHS) benannt wurden. Die einzelnen Registrierungsstellen sind für verschiedene thematische Gruppen (z. B. Zwiebel- und Knollenpflanzen) oder taxonomische Gruppen (Familien, Gattungen) zuständig. Ihr Verzeichnis steht zwar im Anhang des ICNCP (siehe Trehane & al., 1995), aktuelle Angaben zu den Registrierungsstellen finden sich jedoch auf den Internetseiten der ISHS (www.ishs.org). Für viele weniger stark durchgezüchtete Pflanzengruppen sind solche Stellen allerdings nicht benannt, sodass etwaige neue Kultivare wenigstens auf nationaler Ebene bei einer mit der Registrierung von Pflanzensorten befassten Stelle erfasst werden sollten. In Deutschland ist für Sortenzulassung und Sortenschutz das Bundessortenamt zuständig; das ist jedoch ein sortenrechtliches Verfahren und ersetzt die nomenklatorische Registrierung bei einer ICRA nicht.
Deutsche Pflanzennamen und ihre historische Entwicklung
Die deutsche Pflanzenbenennung ist – anders als die internationale wissenschaftliche (lateinische) botanische Nomenklatur und die Namensgebung der Kulturpflanzen – nicht einheitlich kodifiziert, wird also nicht auf Grundlage eines verbindlichen Regelwerks gebildet und verwendet. Volkstümliche (vernakuläre) Pflanzennamen sind kulturhistorisches und sprachliches Erbe jedes Volkes, ein Abbild von Volkswissen und historischer Erfahrung aus einer Zeit enger Verbindung von Mensch und Natur. Schriftlich festgehalten wurden viele deutsche Pflanzennamen erstmals im 16. Jahrhundert von den „Vätern der Botanik“ – von Otto Brunfels (Herbarum vivae eicones, 1530), Hieronymus Bock (New Kreütter Buch, 1539) und Leonhart Fuchs (New Kreüterbuch, 1543); ihre Kräuterbücher prägen die deutsche Pflanzenbenennung bis heute. Deutsche Pflanzennamen haben denselben Aufbau wie die wissenschaftlichen (lateinischen), das heißt, zu einem wissenschaftlichen Gattungsnamen gehört ein deutscher Gattungsname (z. B. Fagus – Buche), und für Arten, Unterarten und niedrigere Kategorien gilt, dass dem Gattungsnamen (dem Substantiv) Attribute (Epitheta) folgen, z. B. Vitis vinifera subsp. sylvestris – Wilde Weinrebe. Dieses System ist für Gebrauch und Ableitung sehr praktisch; die Artnamen sind häufig Übersetzungen und benennen ein charakteristisches Merkmal der Pflanze (aquaticus – Wasser-, albiflorus – weißblütig, ramosus – ästig, esculentus – essbar und so weiter). Die deutschen Namen heimischer und bei uns seit Langem kultivierter Pflanzen fremder Herkunft sind eine Auswahl aus alten Volksnamen. Für einige bekannte heimische oder lange kultivierte Arten haben sich bereits im 19. Jahrhundert traditionelle Namen in substantivischer Form eingebürgert, z. B. Immergrün, Brombeere, Traubeneiche und für die Weide der Name Salweide. Zur Festigung der deutschen Pflanzennamen trugen vor allem botanische Werke bei, die für Schule und breite Öffentlichkeit bestimmt waren. Für den heutigen Gebrauch maßgeblich sind vor allem Zanders Handwörterbuch der Pflanzennamen (1927 von Robert Zander begründet, heute als „Der große Zander“ fortgeführt) sowie die Bestimmungswerke Rothmaler – Exkursionsflora von Deutschland und Schmeil-Fitschen – Flora von Deutschland. In der gärtnerischen Praxis begegnen uns jedoch regelmäßig fremdländische Pflanzen, die in diesen Werken nicht enthalten sind. Für fremdländische Gehölze, die für unsere Freilandbedingungen infrage kommen, ist vor allem die Namensgebung in Krüssmanns Handbuch der Laubgehölze und Handbuch der Nadelgehölze zu empfehlen; einen praxisnahen Überblick bietet unsere Übersicht zu den Laubgehölzen, ergänzt durch die älteren dendrologischen Handbücher (Krüssmann 1976–1978).
